


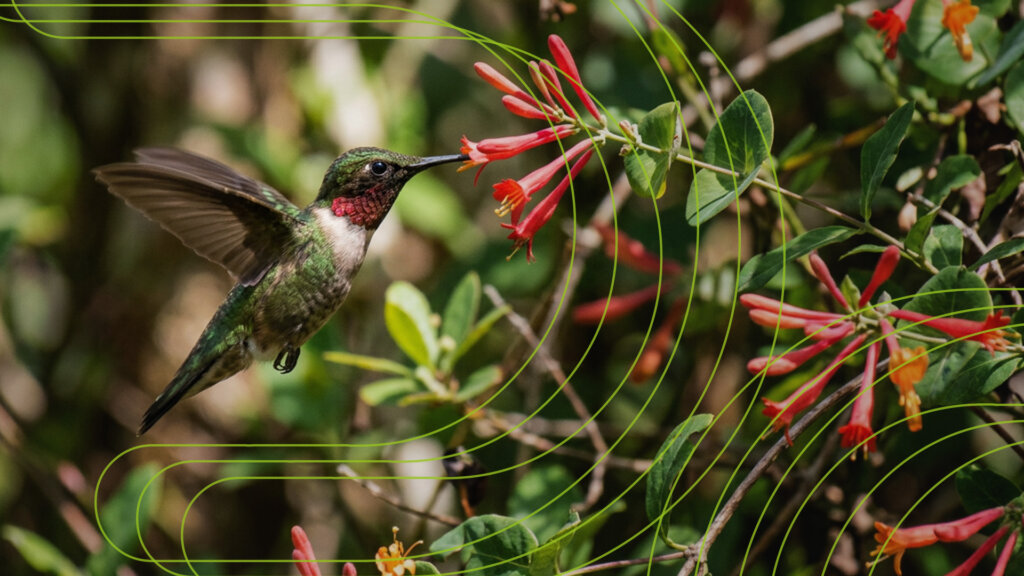
In natura, l’energia non è mai gratuita. Ogni battito d’ala, accelerazione, immersione o variazione della temperatura corporea richiede risorse che devono essere recuperate attraverso il cibo. Per un animale, quindi, sopravvivere non significa soltanto procurarsi energia, ma spenderla nel momento giusto e con il massimo rendimento.
L’evoluzione non produce organismi perfetti, né elimina ogni spreco. Seleziona però soluzioni sufficientemente vantaggiose in uno specifico ambiente. Il risultato è un repertorio di strategie aerodinamiche, comportamentali e metaboliche che permette agli animali di affrontare viaggi oceanici, notti fredde, correnti marine, inseguimenti e mesi di digiuno.
L’albatros: volare usando il vento
L’albatros urlatore percorre migliaia di chilometri sopra l’Oceano Antartico grazie al volo a vela dinamico. L’animale attraversa ripetutamente lo strato in cui la velocità del vento cambia tra la superficie del mare e l’aria sovrastante: sale controvento, vira e ridiscende, trasformando il gradiente del vento in velocità.
Le ali lunghe e strette riducono la resistenza aerodinamica, mentre un particolare sistema di tendini consente di mantenerle estese con un impegno muscolare limitato. I rilevamenti satellitari e cardiaci di Henri Weimerskirch e colleghi hanno mostrato che, in presenza di venti laterali o favorevoli, il costo energetico del volo è poco superiore a quello di un uccello fermo a terra.
Il momento più dispendioso è invece il decollo dall’acqua: il battito cardiaco può raggiungere valori tre o quattro volte superiori a quelli basali. L’albatros concentra così lo sforzo in pochi momenti critici e lascia che sia il vento a sostenere gran parte del viaggio (Weimerskirch et al., 2000).
- Vantaggio quantificabile: durante la crociera il consumo si avvicina a quello del riposo; lo sforzo maggiore viene concentrato nei brevi decolli, non nella distanza percorsa.
Il colibrì: abbassare il metabolismo del 95%
Durante il giorno il colibrì sostiene uno dei metabolismi più elevati tra i vertebrati. Di notte, quando non può alimentarsi e il suo piccolo corpo disperde rapidamente calore, mantenere una temperatura prossima ai 39 °C sarebbe estremamente costoso.
La soluzione è il torpore, uno stato reversibile durante il quale diminuiscono temperatura corporea, ventilazione e consumo di ossigeno. In uno studio sui colibrì gola rubino esposti a una temperatura ambientale di 10 °C, la temperatura corporea è scesa da circa 37 a 13 °C, mentre il metabolismo dell’intero organismo è diminuito del 95% rispetto alla normotermia (Hutchinson et al., 2024).
La ricerca ha inoltre mostrato che i mitocondri del muscolo pettorale non vengono attivamente “spenti”, come avviene in alcuni mammiferi. Gran parte del risparmio sembra derivare dall’abbassamento della temperatura e dalla conseguente riduzione della domanda energetica.
- Risparmio misurato: riduzione del 95% del tasso metabolico durante il torpore sperimentale.
Lo squalo grigio del reef: trasformare la corrente in sostegno
Gli squali grigi del reef hanno una galleggiabilità negativa e devono continuare a nuotare per non perdere quota. Nei canali dell’atollo di Fakarava, in Polinesia francese, sfruttano però le correnti ascendenti generate quando l’acqua incontra i pendii della barriera corallina.
Bio-logger, telecamere e modelli biomeccanici hanno mostrato che gli squali si posizionano nelle zone di risalita e “surfano” controcorrente. Quando vengono spinti indietro, si lasciano trasportare e tornano nella parte iniziale del flusso, seguendo una traiettoria simile a quella di un nastro trasportatore.
Non smettono di nuotare, ma riducono la potenza necessaria per mantenere la posizione nella colonna d’acqua. Il paesaggio marino diventa così una vera e propria infrastruttura energetica (Papastamatiou et al., 2021).
- Risparmio stimato: riduzione del metabolismo di routine compresa tra il 10 e il 15% nelle zone di corrente ascendente.
Il ghepardo: riconoscere quando la caccia non conviene più
Per decenni si è sostenuto che il ghepardo interrompesse la caccia quando il corpo raggiungeva un limite termico. I dati raccolti su animali liberi da Robyn Hetem e colleghi hanno smentito questa spiegazione.
Durante gli inseguimenti la temperatura corporea non aumentava in modo significativo. Al termine della corsa era in media di 38,4 °C nelle cacce riuscite e di 38,3 °C in quelle abbandonate: valori lontani dal presunto limite di 40,5 °C descritto nei precedenti esperimenti su tapis roulant (Hetem et al., 2013).
Lo studio non dimostra l’esistenza di un “punto di resa” calcolato coscientemente, né quantifica un risparmio percentuale. Suggerisce piuttosto che l’abbandono dipenda dalla valutazione dell’opportunità: distanza, movimenti della preda, possibilità di cattura e rischio di spendere risorse senza ottenere cibo.
- Vantaggio quantificabile: nessuna differenza termica rilevante tra successo e fallimento, 38,4 contro 38,3 °C. L’efficienza consiste nell’interrompere un investimento dal rendimento sempre più incerto.
L’orso bruno: riciclare invece di eliminare
Durante il letargo gli orsi possono rimanere per mesi senza mangiare, bere, urinare o defecare. Per affrontare questo lungo digiuno consumano soprattutto le riserve di grasso e riducono drasticamente il dispendio energetico. Negli ursidi, misurazioni dirette hanno registrato un metabolismo pari a circa il 25% del livello basale e una frequenza cardiaca capace di scendere da 55 a 9 battiti al minuto (Tøien et al., 2011).
La trasformazione più sorprendente riguarda però l’azoto. Normalmente, quello prodotto dal metabolismo delle proteine viene convertito in urea ed eliminato attraverso l’urina. Nell’orso l’urea ritorna invece in circolo e, grazie anche all’attività dei microrganismi intestinali, parte del suo azoto può essere riutilizzata per formare amminoacidi e proteine (Barboza et al., 1997).
Negli orsi bruni scandinavi, durante il letargo la concentrazione di urea nel sangue risultava dimezzata, nonostante la filtrazione renale fosse ridotta a circa un quarto dei livelli normali. Il calcio e le principali categorie di amminoacidi rimanevano inoltre relativamente stabili, contribuendo alla conservazione di muscoli e ossa durante l’immobilità (Stenvinkel et al., 2013).
- Vantaggio quantificabile: urea ematica ridotta di circa il 50% e filtrazione renale ridotta di quasi il 70%, senza il deterioramento muscolare e osseo atteso dopo mesi di inattività.
L’efficienza non è immobilità
Questi animali non risparmiano energia facendo sempre meno. La usano in modo selettivo. L’albatros affida la propulsione al vento; il colibrì sospende temporaneamente la termoregolazione; lo squalo legge la topografia delle correnti; il ghepardo interrompe un investimento poco promettente; l’orso trasforma prodotti di scarto in nuove risorse.
È questo il messaggio di #RicaricatiDiNatura: l’efficienza non coincide con la rinuncia, ma con la capacità di adattare intensità, tempi e strumenti alle condizioni reali. La natura non offre formule da copiare alla lettera. Mostra però che ogni sistema capace di durare dipende da una gestione intelligente dell’energia.
Fonti e letteratura scientifica
-
Barboza, P. S., Farley, S. D., & Robbins, C. T. (1997). Whole-body urea cycling and protein turnover during hyperphagia and dormancy in growing bears (Ursus americanus and U. arctos). Canadian Journal of Zoology, 75(12), 2129–2136. doi:10.1139/z97-848.
-
Hetem, R. S., Mitchell, D., de Witt, B. A., Fick, L. G., Meyer, L. C. R., Maloney, S. K., & Fuller, A. (2013). Cheetah do not abandon hunts because they overheat. Biology Letters, 9(5), 20130472. doi:10.1098/rsbl.2013.0472.
-
Hutchinson, A. J., Staples, J. F., & Guglielmo, C. G. (2024). The mitochondrial physiology of torpor in ruby-throated hummingbirds, Archilochus colubris. Journal of Experimental Biology, 227(21), jeb248027. doi:10.1242/jeb.248027.
-
Papastamatiou, Y. P., Iosilevskii, G., Di Santo, V., Huveneers, C., Hattab, T., Planes, S., Ballesta, L., & Mourier, J. (2021). Sharks surf the slope: Current updrafts reduce energy expenditure for aggregating marine predators. Journal of Animal Ecology, 90(10), 2302–2314. doi:10.1111/1365-2656.13536.
-
Stenvinkel, P., Fröbert, O., Anderstam, B., et al. (2013). Metabolic changes in summer active and anuric hibernating free-ranging brown bears (Ursus arctos). PLOS ONE, 8(9), e72934. doi:10.1371/journal.pone.0072934.
-
Tøien, Ø., Blake, J., Edgar, D. M., Grahn, D. A., Heller, H. C., & Barnes, B. M. (2011). Hibernation in black bears: Independence of metabolic suppression from body temperature. Science, 331(6019), 906–909. doi:10.1126/science.1199435.
-
Weimerskirch, H., Guionnet, T., Martin, J., Shaffer, S. A., & Costa, D. P. (2000). Fast and fuel efficient? Optimal use of wind by flying albatrosses. Proceedings of the Royal Society B, 267(1455), 1869–1874. doi:10.1098/rspb.2000.1223.